Deep life · 地球生命
地球生命・深時間
宇宙長河已把能量、物質與時空寫到生命起源為止,本頁不再重述暴脹、核合成與星系。這裡接上的是地球生命本身:早期代謝與含氧大氣、寒武紀的身體構型、古生代的海洋與陸地植物,然後是三疊紀、侏羅紀、白堊紀,以及新生代的哺乳動物輻射。年代一律標「約」,採主流綜述,不把單一化石點寫成全球定論。約七百萬年前交接入類起源。本頁只寫自然史。
環境類群產物推動力
01 · 約 40–20 億年前
早期生命與大氧化
 01
- 可自我維持的代謝與複製
- 氧氣在大氣與淺海顯著累積
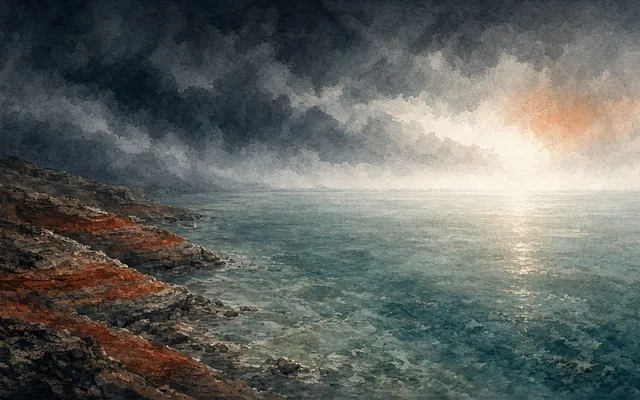
主流綜述把可自我維持的代謝或複製,放在約四十億至三十五億年前的窗口。具體場所仍有熱液噴口、潮間水體與礦物表面等假說並存,本頁不採單一路徑為定論。其後約二十四億至二十億年前,產氧光合作用使游離氧在大氣與淺海顯著累積,是為大氧化。宇宙長河只保留這條粗線,細節從這裡寫起。
環境
早期地球的地表水已經穩定到足以維持海洋與水循環,但大氣仍以還原性氣體為主。火山供氣、隕石帶來的有機物,以及海底熱液的溫度梯度,為碳、氮、硫的循環提供場所。淺海光照帶與深海無光帶並存,化學條件隨地區而異,不宜寫成全球均一的培養皿。
優勢類群
這一階段的優勢類群是微生物。產甲烷菌、硫酸鹽還原菌與後來的產氧光合細菌,分別占據不同的氧化還原生態位。真核生物的起源通常被放在大氧化之後的數億年裡,線粒體與宿主的合併仍有時間爭議,宜標約。多細胞組織尚未成為化石記錄的主體。
深讀早期生命與大氧化
界定事件
可自我維持的代謝與複製。氧氣在大氣與淺海顯著累積
關鍵產物
- 產物:最重要的產物是含氧的水體與大氣,以及由此改寫的礦物組合。條帶狀鐵建造記錄了鐵與氧的反覆相遇。好氧呼吸這條代謝路徑一旦可行,單位有機物所能調動的能量便高於多數厭氧途徑,為後來更大的細胞與食物網留下化學餘地。這是自然史意義上的產物,不是技術產品。
推動力
- 推動力:推動力來自分化本身與地球化學緩衝,而不是一次突然的決策。光合生物把光能固定為有機碳並釋放氧;海洋中的鐵、硫與還原性氣體則消耗氧。當產出持續超過消耗,游離氧才得以積累。氣候與火山排氣會改變這張收支表,所以大氧化的強度與次數仍有綜述區間。
溫和影響
為後續複雜細胞與食物網準備化學前提,並與宇宙長河的生命起源粗線相接。
環境產物推動力
環境產物推動力
02 · 約 5.4–4.9 億年前
寒武紀大爆發
 02
- 左右對稱動物的身體構型迅速增多
- 捕食與礦化外殼進入化石記錄
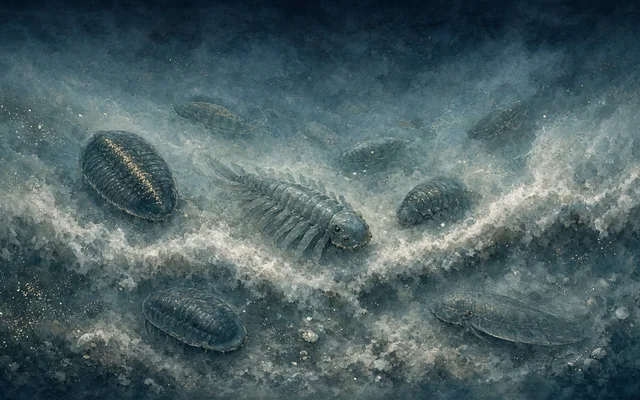
約五億七千萬至五億四千萬年前,埃迪卡拉生物群已出現多種大型軟體生物。左右對稱、分節、具消化與運動構造的動物,則在寒武紀的化石記錄裡迅速增多。公共敘事稱之為大爆發。它描述的是身體構型與生態關係在地質時間上的相對加快,不是一日之內的事件,也不是此後不再有新門類。
環境
寒武紀的海平面相對較高,廣闊的淺海大陸架為底棲與游泳生物提供空間。大氣與海水含氧量已高於前寒武紀的多數區間,足以支持較活躍的代謝,但局部缺氧仍常見。海底微生物席依然存在,只是不再獨占整個底質。
優勢類群
節肢動物、腕足動物、軟體動物、棘皮動物與早期脊索動物的親屬,在澄江、布爾吉斯等頁岩以及全球碳酸鹽與泥岩中留下可對照的記錄。奇蝦類等大型捕食者顯示,食物網已有明確的營養級。許多類群仍難以放進現生門類,分類位置隨新標本修訂。
深讀寒武紀大爆發
界定事件
左右對稱動物的身體構型迅速增多。捕食與礦化外殼進入化石記錄
關鍵產物
- 產物:這一階段的產物是可礦化的外殼、外骨骼與牙齒狀構造,以及由捕食關係組織起來的海洋食物網。眼、附肢與分節身體使運動和感覺可以寫進解剖,而不只留在化學循環裡。糞化石與捕食痕跡則是行為的地質記錄。植物與複雜陸地生態尚未登場。
推動力
- 推動力:推動力包括氧氣條件的改善、基因調控網絡允許身體分區,以及捕食本身帶來的選擇。礦化可能與海水化學、捕食壓力同時有關,單一原因不足以解釋全球記錄。板塊位置改變淺海面積,但本頁不把某一條海岸線寫成爆發的開關。
溫和影響
生物信息寫進可保存的身體構型,生態位從微生物席擴展到運動與捕食。
環境類群產物推動力
環境類群產物推動力
03 · 約 4.9–2.5 億年前
古生代海洋與陸地植物
 03
- 有頜魚類與陸地植物森林
- 四足動物上岸
- 二疊紀末類群更替
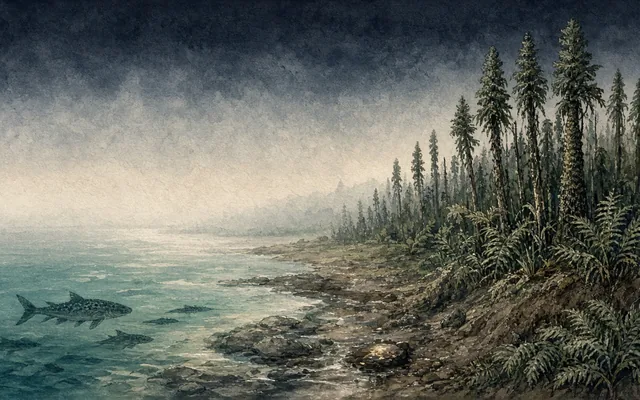
寒武紀之後,古生代的其餘時間把生命從淺海推上陸地。奧陶紀海洋動物繼續分化;志留紀至泥盆紀,維管植物與有頜魚類先後成為公共敘事的主線;石炭紀森林大面積發育;二疊紀陸相群落已包括多樣的合弓類。約二億五千二百萬年前的二疊紀末,海洋與陸地同時出現大規模類群更替。主流綜述把它與大規模火山、海洋缺氧和碳循環擾動放在一起討論,相對權重仍有學術討論。本頁只記自然史後果,不寫成災變故事。
環境
古生代的大陸拼合幾經改動,石炭紀至二疊紀逐漸形成盤古大陸的主體。南半球一度有大規模冰川,石炭紀的濕潤低地則適合森林。淺海面積隨海平面升降而伸縮,珊瑚礁與腕足動物群落反覆重組。內陸盆地開始積累河湖沉積,為後來的陸相化石提供場所。
優勢類群
海洋裡,魚類從無頜到有頜,盾皮魚、軟骨魚與硬骨魚先後占據不同生態位。陸上,裸蕨之類的早期植物之後,石松、楔葉與種子蕨組成高大森林;昆蟲發展出飛行。四足動物由肉鰭魚類的一支在泥盆紀進入濱岸,石炭紀與二疊紀已有多樣的兩棲類與羊膜動物。植物與節肢動物的組合,是陸地食物網的基礎。
深讀古生代海洋與陸地植物
界定事件
有頜魚類與陸地植物森林。四足動物上岸。二疊紀末類群更替
關鍵產物
- 產物:森林的產物包括木質部、葉與孢子花粉,以及大面積埋藏後形成的煤炭前身。羊膜卵使脊椎動物的繁殖可以離開開闊水面。昆蟲的翅是另一條進入空氣的構造,早於脊椎動物的滑翔與飛行。這些構造把能量與信息固定在身體和地層裡,供後續生態系使用。
推動力
- 推動力:推動力是光照下的陸地初級生產、土壤與根系對岩石風化的改變,以及大陸拼合帶來的氣候分帶。植物加強風化會影響大氣二氧化碳,進而影響氣候,形成緩慢的反饋。二疊紀末的環境壓力則來自地球內部排氣與海洋化學,而不是單一生物類群的「失敗」。
溫和影響
初級生產從海藻擴展到陸地森林,脊椎動物獲得在空氣中生活的身體前提。
環境類群產物推動力
環境類群產物推動力
04 · 約 2.52–2.01 億年前
三疊紀
 04
- 盤古大陸上的乾旱內陸與季風海岸
- 主龍類、早期恐龍與哺乳型動物
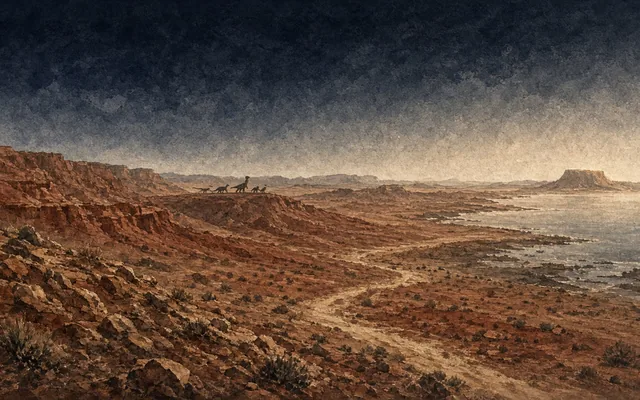
三疊紀緊接二疊紀末的類群更替,約從二億五千二百萬年前延續到約二億零一百萬年前。它是中生代的開端,也是侏羅紀的直接前鄰。海洋與陸地都經歷漫長的復原:有些類群很快重新占據生態位,有些則要到三疊紀中晚期才多樣化。早期恐龍已經出現,但在許多陸相群落裡尚未獨占優勢。
環境
盤古大陸在三疊紀仍大致連成一塊,內陸遠離海岸,季節性乾旱顯著,紅色碎屑岩與蒸發岩常見。赤道與副熱帶可能存在強烈的季風對比:濕季帶來短促的河流與植被,乾季則限制大型森林的連續分布。海侵在中晚期擴大淺海,特提斯海域成為海洋生物復原的重要場所。氣候整體偏暖,極地冰川稀少。以上均為主流綜述的約略圖景,區域剖面並不完全同步。
優勢類群
陸上,主龍類分化為鱷形類、翼龍與恐龍等支系;非主龍的合弓類仍在,哺乳型動物的小型夜間生態位開始成形。植食動物包括二齒獸類的殘餘以及後來的恐龍與其他主龍。海洋中,魚龍等海生爬行類、菊石與新的硬骨魚重建食物網,珊瑚礁在中晚期重新發育。植物以裸子植物、種子蕨與蕨類為主,開花植物尚未出現。
深讀三疊紀
界定事件
盤古大陸上的乾旱內陸與季風海岸。主龍類、早期恐龍與哺乳型動物
關鍵產物
- 產物:三疊紀留給侏羅紀的產物,是若干關鍵身體構型:直立步態的主龍類肢骨、翼龍的翼膜前身,以及哺乳型動物的下頜與中耳逐步分化。這些都不是一日完成的器官,而是在三疊紀化石裡可以逐段核對的結構。陸地群落的另一產物,是災後重新接上的食物鏈:初級生產、植食與捕食再次形成可追蹤的營養級。
推動力
- 推動力:推動力首先是空出的生態位與仍在拼合的盤古大陸。內陸乾旱限制了森林規模,也篩選出耐旱的植物與能長距離移動的脊椎動物。晚三疊世的火山活動與氣候濕度變化,與一次較小規模的類群更替時間相近,因果細節仍有討論。板塊尚未大幅裂開,海岸線相對簡單,這與隨後侏羅紀的張裂形成對照。
溫和影響
中生代的身體構型與陸地食物網在災後生態位中重新組織。
環境類群產物推動力
環境類群產物推動力
05 · 約 2.01–1.45 億年前
侏羅紀
 05
- 淺海與裸子植物森林並存
- 蜥腳類與獸腳類占據多數陸相優勢
- 羽毛與翼膜兩條飛行前奏
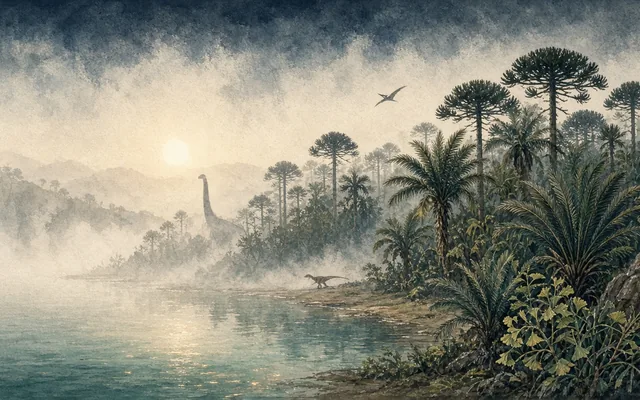
侏羅紀約從二億零一百萬年前延續至約一億四千五百萬年前,夾在三疊紀的復原與白堊紀的開花植物、高海平面之間。主流綜述把它看成盤古大陸明顯張裂、淺海擴大、裸子植物森林穩定占據陸地的一段。恐龍在許多陸相盆地成為優勢脊椎動物,但海洋、天空與林下各有自己的類群,不宜寫成單一主角的時代。以下分環境、優勢類群、產物與推動力說明。年代取國際年代地層表的約數,區域化石的首現與末現可以偏早或偏晚。
環境
三疊紀末至侏羅紀初,盤古大陸開始沿多條裂谷張開。北大西洋的雛形、特提斯海的擴展,以及岡瓦納與勞亞之間的調整,使海岸線變長,內陸不再像三疊紀那樣整片遠離海洋。水汽更容易進入盆地,河流與湖泊沉積廣布,形成後來稱為大陸紅層與湖相頁岩的多種組合。氣候整體偏暖,主流估計大氣二氧化碳高於今日,極地少見持久冰蓋,但季節性仍然存在,高緯地區並非沒有冬季。淺海大陸架面積大,碳酸鹽台地與缺氧事件形成的黑色頁岩交替出現,記錄了生產力與水體分層的波動。植被以松柏、蘇鐵、銀杏類與蕨類為主,森林可以在廣闊的沿海平原上連續分布。本頁把這些圖景標為約與主流綜述:單一剖面的古溫度數字不宜直接換成全球常數。
優勢類群
陸上的優勢植食者,在許多盆地是大型蜥腳類恐龍。它們以高大裸子植物的枝葉為食,長頸與巨大體型是對垂直方向食物的一種解剖回應,消化則依賴發酵,具體生理仍多為推論。獸腳類恐龍占據捕食與雜食的多個體型檔,從小型奔跑者到大型捕食者都有化石。鳥臀類已經出現,裝甲、角與複雜牙列的大輻射,主流綜述多放在稍後的白堊紀。天空中,翼龍是已經能夠主動飛行的脊椎動物。海洋裡,魚龍、蛇頸龍與海生鱷形類分占不同營養級,菊石與箭石是常見的頭足類,硬骨魚繼續分化;礁體由六射珊瑚等建造。林下與土壤中,昆蟲多樣,部分類群與植物的相互關係加深。哺乳型動物仍然小型,多被放在夜間或隱蔽生態位,卻已在侏羅紀留下更完整的骨骼。沒有一個類群單獨定義這個紀。
深讀侏羅紀
界定事件
淺海與裸子植物森林並存。蜥腳類與獸腳類占據多數陸相優勢。羽毛與翼膜兩條飛行前奏
關鍵產物
- 產物:侏羅紀在自然史上的產物,是一批可以在化石裡核對的構造與生態關係。羽毛或羽毛狀皮膚衍生物見於多件獸腳類標本。近鳥類、曉廷龍等中晚侏羅世化石,把分枝狀羽毛前推到鳥類起飛之前;主流綜述把它們理解為顯示、保溫,以及空氣動力的前奏,而不是某一日突然完成的振翅飛行。哪些屬種已經能滑翔、哪些仍以地面展示為主,仍隨新標本與空氣動力模型修訂。翼龍的翼膜、加長的第四指與輕盈骨骼,是另一條飛行路線的產物,與後來鳥類的羽毛翅膀並非同一器官。植物方面,高大裸子植物林產出木材、樹脂、花粉與落葉,這些材料既餵養植食動物,也在湖沼裡成為可保存的信息載體。淺海則把浮游與底棲生產力固化為碳酸鹽與頁岩。恐龍的足跡、巢與蛋化石,使行為不再只靠骨骼推測。以上都是身體、生態與地層意義上的產物。
推動力
- 推動力:推動侏羅紀生物格局的,主要是板塊運動與氣候,而不是單一的災變或目的論上的進步。大陸張裂改變洋流與水汽路徑,內陸盆地更容易維持植被與河流,大型植食恐龍從而獲得比較連續的初級生產。海平面相對較高,大陸架面積擴大,海洋生物的棲息空間增加;洋中脊活動與火山排氣影響碳循環,維持暖室氣候,使高緯地區也能出現森林。氧氣與二氧化碳的具體濃度仍有模型差異,本頁只記方向:相對溫暖、海岸線破碎、陸相盆地發育。在這個舞台上,選擇來自捕食、植物的高度與防衛、以及空氣動力對滑翔和飛行的篩選。侏羅紀與白堊紀之交有類群進退,但主流敘事把它看成漸進和區域性的更替,不宜寫成末日。三疊紀留下的身體構型,在這些推動力下展開為侏羅紀的食物網;白堊紀則在此基礎上迎來開花植物與更高的海平面。
溫和影響
中生代陸地食物網與飛行構造在張裂的大陸和暖室氣候中成形。
環境類群產物推動力
環境類群產物推動力
06 · 約 1.45–0.66 億年前
白堊紀與末期更替
 06
- 開花植物擴展
- 高海平面與白堊沉積
- 約 6600 萬年前的類群更替
白堊紀約從一億四千五百萬年前至約六千六百萬年前,是中生代的最後一段,也是侏羅紀格局的延續與改寫。大陸繼續裂解,海平面在許多時段更高,開花植物進入化石記錄並逐步改變陸地初級生產。約六千六百萬年前,非鳥恐龍、菊石與部分海生爬行類等類群大規模消失。主流綜述同時討論小行星撞擊與大規模火山活動兩條環境壓力,兩者的相對權重仍有學術討論。本頁只記自然史後果。
環境
南大西洋張開,岡瓦納進一步拆分為今天各大洋所包圍的陸塊雛形。淺海多次漫上大陸內部,形成廣闊的陸表海,白堊這種顆粒極細的碳酸鹽沉積因而得名。氣候在多數時段溫暖,白堊紀中期有過顯著的高溫區間,區域性的缺氧事件在頁岩裡留下記錄。內陸盆地仍然發育河流與湖泊,與侏羅紀相比,沿海平原的規模往往更大。
優勢類群
恐龍仍然是許多陸相生態系的大型脊椎動物:鴨嘴龍類、角龍類、甲龍類與暴龍類等在晚白堊世尤為常見,地理分區隨大陸裂解而加深。鳥類已經多樣,並在紀末之後延續。哺乳動物仍以小型類群為主。海洋中,滄龍取代了侏羅紀部分魚龍的生態位,蛇頸龍仍然存在,菊石到達形態上的高峰。開花植物從早白堊世的局部出現,擴展到晚白堊世的多種葉形與花粉類型;裸子植物並未消失。
深讀白堊紀與末期更替
界定事件
開花植物擴展。高海平面與白堊沉積。約 6600 萬年前的類群更替
關鍵產物
- 產物:白堊紀最顯著的產物是開花植物的花、果實與更有效的導水構造,以及與之相伴的昆蟲傳粉關係。花粉記錄使這項產物可以跨地區對比。鳥類的飛翔羽與龍骨突,把侏羅紀的羽毛前奏推進到更完整的飛行身體。白堊沉積本身是海洋鈣質超微化石的地質產物,記錄了開闊海洋的生產力。這些產物改寫了接下來新生代所能繼承的生態基礎。
推動力
- 推動力:板塊繼續張裂,推動海平面、洋流與生物地理分區。開花植物改變了林冠結構與昆蟲食物,形成新的選擇。紀末的環境壓力來自地外撞擊與大火成岩省的排氣,兩者都可能在短於平常演化節奏的時間裡改變光照、溫度與食物鏈;細節與先後仍在修訂。更替之後空出的生態位,是新生代哺乳動物與鳥類輻射的前提,而不是敘事上的終點。
溫和影響
中生代食物網在開花植物與廣海條件下重組,並在紀末讓出一批陸地與海洋生態位。
環境類群產物推動力
環境類群產物推動力
07 · 約 6600 萬年前起
新生代哺乳動物輻射
 07
- 古近紀體型與食性迅速分化
- 新近紀草地擴展與食草動物
約六千六百萬年前之後,新生代開始。哺乳動物在古近紀迅速分化出多種體型與食性,鳥類占據飛行與地面的多個生態位,開花植物森林在溫暖期大面積分布。約三千四百萬年前起氣候整體轉涼,南極冰蓋逐步發育;新近紀草地擴展,食草哺乳動物的高冠牙與群居生態成為陸相主線之一。靈長類在熱帶森林中分化。這些都是人族出現之前的生態背景。
環境
古近紀早期繼承了溫暖氣候,高緯地區可見森林。其後溫度下降,海陸分布逐漸接近今日的輪廓,但仍有重要差異:特提斯殘海逐步封閉,青藏高原的隆起在新近紀顯著影響亞洲季風,具體高度與時間仍有討論。草地在中新世前後擴展,森林則在熱帶與部分溫帶保留。
優勢類群
早期新生代的優勢大型動物包括多種現已消失的哺乳動物目,以及鱷魚、不飛鳥在局部生態系中的角色。稍後,奇蹄類、偶蹄類、長鼻類與食肉類重新組織陸地食物網。鯨類回到海洋。靈長類從原猴類到猿類的分化,發生在森林環境中。人類譜系的細節留到下一階段與人類起源頁,此處只確認靈長類已經在場。
深讀新生代哺乳動物輻射
界定事件
古近紀體型與食性迅速分化。新近紀草地擴展與食草動物
關鍵產物
- 產物:高冠牙、反芻與蹄行,是草地擴展的解剖產物。靈長類的抓握與立體視覺,是樹棲生活的產物。開花植物的果實與種子繼續改寫動物的食性。這些構造都在化石與現生比較中可被核對,出現時間標約。
推動力
- 推動力:推動力是紀末空出的生態位、氣候轉涼,以及草地對森林的部分替代。構造隆起改變區域降雨。選擇因此從「誰能在森林裡做小型夜行者」轉向「誰能利用開闊地的草與視線」。這一段不寫技術,也不寫制度。
溫和影響
中生代讓出的生態位被哺乳動物、鳥類與開花植物森林重新填滿。
環境類群產物推動力
環境類群產物推動力
08 · 約 700 萬年前
交接人族
 08
- 非洲森林—開闊地環境
- 早期人族與其他猿類分途
約七百萬年前,主流綜述認為人族與黑猩猩譜系的共同祖先所在支系,在非洲開始分途。確切的屬種、地點與年份仍會隨新化石移動,本頁只用約數標出交接點。此前數千萬年的靈長類演化、草地與森林的並存,已經寫在新生代一節。這裡不再展開直立行走的細節、石器或走出非洲,那些屬於人類起源時間線。
環境
晚中新世的非洲,森林、疏林與更開闊的草地同時存在,比例隨地區和軌道尺度的氣候波動而改變。水源沿河谷分布。這個鑲嵌環境是早期人族的生態舞台,不是單一草原取代全部森林的瞬間。
優勢類群
當時的優勢大型動物仍是各類食草哺乳動物與食肉類。猿類只是森林與林緣的一支。人族的出現不意味其他類群退場,只意味此後的敘事可以改從人族化石寫起。
深讀交接人族
界定事件
非洲森林—開闊地環境。早期人族與其他猿類分途
關鍵產物
- 產物:在交接點上,可以確認的產物是樹棲靈長類已經具備的感覺與運動基礎,以及開闊地所要求的不同移動方式。哪些化石已經習慣雙足、哪些仍以樹棲為主,留給人類起源頁按標本討論。
推動力
- 推動力:推動這一次譜系分途的,是非洲氣候波動與棲息地鑲嵌,而不是地球生命頁所能展開的文化或技術。板塊尺度的隆起與季風,只作為更早新生代推動力的延續。約七百萬年這個數字是主流綜述的約數。
溫和影響
地球生命頁在人族分化處收束,交接入類起源。
環境類群產物推動力
環境類群產物推動力
交接人類起源
更早的能量、物質與時空尺度,仍見宇宙長河;本頁從生命化學與含氧大氣寫起,不把宇宙史再講一遍。
約七百萬年前,演化進入人族階段。森林與開闊地的生態背景到此為止,化石、石器與基因組請繼續閱讀人類起源時間線。文明制度、技術與貨幣另見文明編年,兩條敘事前後銜接、互不覆蓋。
返回宇宙長河約七百萬年前,演化進入人族階段侏羅紀專節侏羅紀返回文明總覽
來源
| # | 機構/入口 | 說明 | 網址 |
|---|---|---|---|
| 1 | International Commission on Stratigraphy · Chart | 國際年代地層表,紀與世的約略界線 | https://stratigraphy.org/chart |
| 2 | UCMP · The Jurassic Period | 侏羅紀氣候、恐龍、海洋爬行類與植物的公共綜述 | https://ucmp.berkeley.edu/mesozoic/jurassic/jurassic.php |
| 3 | UCMP · The Triassic Period | 三疊紀盤古大陸、主龍類與災後復原 | https://ucmp.berkeley.edu/mesozoic/triassic/triassic.php |
| 4 | UCMP · The Cretaceous Period | 白堊紀開花植物、高海平面與紀末更替 | https://ucmp.berkeley.edu/mesozoic/cretaceous/cretaceous.php |
| 5 | UCMP · The Proterozoic Eon | 元古宙與大氧化的公共入口 | https://ucmp.berkeley.edu/precambrian/proterozoic.php |
| 6 | British Geological Survey · Geological time | 地質時間與化石記錄的科普入口 | https://www.bgs.ac.uk/discovering-geology/fossils-and-geological-time/geological-time/ |
| 7 | Smithsonian · Paleontology teaching resources | 古生物與深時間公共教學入口 | https://naturalhistory.si.edu/education/teaching-resources/paleontology |
| 8 | 中國科學院南京地質古生物研究所 | 國內地層古生物研究與科學傳播入口 | https://www.nigpas.cas.cn/ |
年代與事件表述均採「約/主流綜述」;上表僅列可公眾核對的地質與古生物入口,不作絕對精準年表。
AI 整合 本頁由公開科普與主流綜述入口整合,僅供研究與編輯參考。